多細胞生物
| 多細胞生物 | |
|---|---|
 | |
| 解剖实体类別 | |
| 上级分类 | 生物、特别解剖实体  |
| 發育過程 | multicellular organism development |
| 拥有特性 | 生理状况、multicellularity |
| 相對概念 | 单细胞生物 |
多细胞生物(英語:multicellular organism)是指由多个、分化的细胞组成的生物体,其分化的细胞各有不同的、专门的功能。大多数可以使用肉眼看到的生物是多细胞生物。所有多细胞生物都属于真核生物。所有动物、陆地植物和大多数真菌都是多细胞生物,许多藻类也是多细胞生物;而少数生物则部分是单细胞,部分是多细胞,如黏菌和盘基网柄菌[1][2]。
多细胞生物通过多种方式形成,例如通过细胞分裂后子细胞不分离,或通过多个单细胞聚集而成[3][2]。群体生物由许多相同个体聚集形成群体,但群体原生生物与真正的多细胞生物之间的界限并不清晰。也存在宏观但技术上仍是单细胞的多核生物,如异形虫,其大小可达20厘米[4]。
组织层次
多细胞生物的组织分多个层次:细胞、组织、器官、器官系统、个体(生物体)[5]。
细胞分化
最简单的多细胞生物如海绵有多种分化的细胞聚集在一起组成。这些分化的细胞包括领细胞(消化细胞)、造骨细胞(结构、支持细胞)、孢子母细胞和扁平细胞(表皮细胞)。虽然这些不同的细胞组成一个有组织的、宏观的多细胞生物,但是它们并不组成互相连接的组织。假如把海绵切开的话,每个部分可以重新组织,继续生存,但是假如将不同的细胞分离开来的话它们无法生存。群聚的单细胞生物如绿藻的每个细胞可以在从群聚分离开后继续生存。
组织
更复杂的生物如钵水母、珊瑚和海葵拥有不同的组织,每个组织由分化的、互相连接的细胞组成,每个组织有特别的功能。比如钵水母的组织包括起保护作用的表皮、起感受作用的神经网,以及起消化作用的胃皮。解剖学的研究课题之一是不同的分化细胞的空间组织。
器官和器官系统
更复杂的生物不但拥有分化的细胞和组织,而且也拥有器官,器官是由多个组织组成的、完成特别功能的结构。原始的器官包括扁形动物门动物的脑(由一组神经节细胞组成),大的器官比如加州紅木的茎(可达90米高),复杂和多功能的器官包括脊椎动物的肝。
最复杂的生物拥有器官系统,一个器官系统是由多个器官组织在一起来完成相关的功能,而每个器官则集中于一个特定的任务。比如脊椎动物的消化系统由口和食道进食、胃来揉烂和液化食物、胰和胆囊产生和分泌消化酶、肠来将营养吸收入血液。
演化历史
在生物演化史中,多细胞生物的出现是重大事件。多细胞性在真核生物中独立演化了至少25次[6][7],也在某些原核生物中独立演化,如蓝菌、黏细菌、放线菌、Magnetoglobus multicellularis 和 Methanosarcina[2]。但复杂的多细胞生物仅出现在六个真核生物类群中:动物、共生菌根真菌、褐藻、红藻、绿藻和陆生植物[8]。动物中演化出了100–150种不同的细胞类型,而植物和真菌中仅有10–20种[9]。
最早的多细胞组织化证据来自30–35亿年前的蓝菌样生物[6]。分米级的多细胞化石最早发现于15.6亿年前的中国高于庄组[10]。被较多研究的最早多细胞真核生物是12亿年前元古宙延展纪的一种红藻(Bangiomorpha pubescens)的化石[11]。21亿年前的弗朗西维利安生物群也被认为可能是最早的多细胞生物之一,但其性质和分类尚存争议[12]。
多细胞性也在部分类群中丧失。真菌中早期分化的支系多为单细胞(如微孢子虫),且多次出现向单细胞性的回归(如酵母菌等)[13][14]。某些红藻和绿藻中也可能发生了多细胞性的丧失[15]。
在多细胞生物中,细胞的生长失控会导致癌症。许多在后生动物出现时已建立的多细胞性相关基因(如控制细胞分化、细胞黏附和细胞间通讯的基因)在癌细胞中失去调控[16]。
起源假说
多细胞生物的起源有多种假说,以下为主要理论。
群体理论
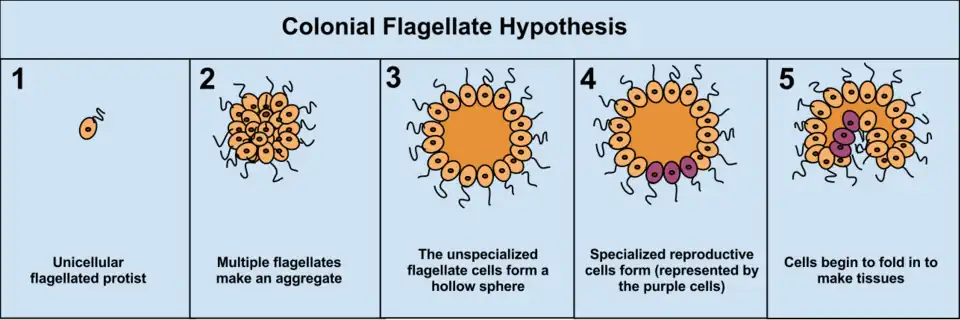
由恩斯特·海克尔于1874年提出的群体理论认为,同种生物的多个个体共生形成多细胞生物。至少部分多细胞生物(如陆生细胞状黏菌)通过细胞分离后再聚集形成;但大多数水生环境中的多细胞生物,则是由于细胞分裂后未能分离而形成[17]。这种群体形成机制可以简单到胞质分裂不完全,但多细胞性通常还涉及细胞分化[18]。
该理论的依据是在16个不同的原生生物门中独立观察到了这一现象。例如,食物短缺时网柄菌会聚集形成一个集体移动到新的位置。团藻科(如空球藻和团藻)也是群体组织的典型例子,团藻由500–50000个细胞组成,其中仅一部分细胞具有生殖功能[19]。
共生理论
共生理论认为最早的多细胞生物由不同物种的共生(合作)演化而来,不同物种各自承担不同功能。随时间推移,这些生物变得相互依赖,各自独立无法生存,最终其基因组整合为同一多细胞生物的基因组[20]。线粒体和叶绿体通过内共生进入动物和植物细胞是共生理论的例证,但这些内共生体的基因组仍保持相对独立,在宿主有丝分裂时独立复制。
细胞化(合胞体)理论
该理论认为一个具有多个细胞核的单细胞生物,可能在每个细胞核周围形成了内膜分隔[21]。许多原生生物(如纤毛虫和黏菌)具有多个细胞核,支持这一假说。但纤毛虫的大小核已分化出明显不同的功能(大核负责日常代谢,小核负责有性生殖),与原始的多核→多细胞转变机制不同。
氧气假说
该假说认为早期地球大气中的氧含量是多细胞生命出现的限制因素[22]。其依据是多细胞生物的出现与大氧化事件后氧含量的升高在时间上相关。但Mills等认为埃迪卡拉纪的氧含量并非复杂生命的必要条件,因此不太可能是多细胞性起源的驱动因素[23]。
雪球地球假说
雪球地球事件是地球表面完全被冰雪覆盖的地质事件,在成冰纪发生了两次快速连续的雪球事件——斯图特冰期和马林诺冰期。这两次冰期可能催化了复杂多细胞生命的演化。两次冰期之间的间隔期可能使浮游藻类在海洋中占据主导,为植物和动物类群的快速多样化铺平道路。复杂生命在马林诺冰期后不久快速出现并多样化,即寒武纪大爆发[24]。Xiao等认为从"无聊十亿年"到雪球地球之间的时期,简单生命有足够的时间创新和演化,从而为多细胞性的演化奠定了基础[25]。
捕食假说
捕食假说认为,为了避免被捕食者吃掉,简单的单细胞生物演化出了多细胞性,使其更难被作为猎物消费。Herron等在单细胞绿藻莱茵衣藻上进行了实验演化,以草履虫作为捕食者。他们发现在捕食者存在的情况下,莱茵衣藻确实演化出了简单的多细胞特征[26]。
实验演化
虽然无法直接观察数亿年前单细胞如何演化为多细胞生物,但可以通过突变实验将单细胞生物转化为多细胞形式,证明这一过程的可行性。
啤酒酵母已知具有"絮凝"特性。第一个被发现导致这一表型的酵母基因是FLO1[27]。更明显的聚簇表型称为"雪花酵母",由单一转录因子ACE2的功能缺失引起。雪花酵母可长成多细胞簇并快速沉降,已在定向演化实验中被鉴定[28]。2023年的研究将雪花酵母进行了超过3000代的定向演化,形成了毫米尺度的宏观多细胞结构,且仅在厌氧条件下演化出了这一特征[29]。
在捕食者存在下,多种绿藻也经实验演化出更大的聚集体。小球藻与捕食者棕鞭藻共同培养时会形成小群体,以增加被摄食的难度。莱茵衣藻经草履虫捕食选择数代后,其"团块"成为持久结构,仅部分细胞变为繁殖体。部分群体更进一步演化出了多细胞繁殖体——不再是单个细胞从团块脱落,而是团块通过分裂出更小的团块进行繁殖[26]。
多细胞化的优势
多细胞性使生物体能够超越扩散作用通常施加的尺寸限制:单细胞增大后表面-体积比降低,难以吸收足够营养并在细胞内运输。多细胞生物因此在增大体积的同时不会受扩散限制,具有竞争优势。它们可以拥有更长的寿命,因为个体细胞死亡后整体仍可继续生存。多细胞性还通过允许一个生物体内分化不同的细胞类型而实现更高的复杂度。
然而,这些是否都能被视为优势仍存争议:绝大多数现存生物是单细胞的;即使在生物量方面,单细胞生物(不包括植物)也比动物更成功[30]。
基因表达的变化
在从单细胞向多细胞生物的演化转变过程中,与繁殖和生存相关的基因表达模式发生了显著变化[31]。在单细胞状态下,繁殖和生存基因的表达增强了单个细胞的适应度;但向多细胞性过渡后,这些基因的表达模式发生了实质性的重组,个体细胞的功能变得更加专门化。随着多细胞生物的形成,基因表达模式在专门负责繁殖的生殖细胞和专门负责生存的体细胞之间实现了区隔化。随着这一过渡的推进,专门化的细胞逐渐丧失了个体性,无法在群体之外独立生存和繁殖[31]。
参见
参考资料
- ^ Chimileski, Scott; Kolter, Roberto. Life at the Edge of Sight: A Photographic Exploration of the Microbial World. Harvard University Press. 2017. ISBN 978-0-674-97591-0.
- ^ 2.0 2.1 2.2 Lyons, Nicholas A.; Kolter, Roberto. On the evolution of bacterial multicellularity. Current Opinion in Microbiology. April 2015, 24: 21–28. PMC 4380822
 . PMID 25597443. doi:10.1016/j.mib.2014.12.007.
- ^ Miller, S.M. Volvox, Chlamydomonas, and the evolution of multicellularity. Nature Education. 2010, 3 (9): 65.
- ^ Hall, Brian Keith; Hallgrímsson, Benedikt; Strickberger, Monroe W. Strickberger's evolution: the integration of genes, organisms and populations 4th. Hall/Hallgrímsson. 2008: 149. ISBN 978-0-7637-0066-9.
- ^ Becker, Wayne M.; et al. The world of the cell. Pearson Benjamin Cummings. 2008: 480. ISBN 978-0-321-55418-5.
- ^ 6.0 6.1 Grosberg, RK; Strathmann, RR. The evolution of multicellularity: A minor major transition? (PDF). Annu Rev Ecol Evol Syst. 2007, 38: 621–654. doi:10.1146/annurev.ecolsys.36.102403.114735.
- ^ Parfrey, L.W.; Lahr, D.J.G. Multicellularity arose several times in the evolution of eukaryotes. BioEssays. 2013, 35 (4): 339–347. PMID 23315654. S2CID 13872783. doi:10.1002/bies.201200143.
- ^ Popper, Zoë A.; Michel, Gurvan; Hervé, Cécile; Domozych, David S.; Willats, William G.T.; Tuohy, Maria G.; Kloareg, Bernard; Stengel, Dagmar B. Evolution and diversity of plant cell walls: From algae to flowering plants. Annual Review of Plant Biology. 2011, 62 (1): 567–590. PMID 21351878. S2CID 11961888. doi:10.1146/annurev-arplant-042110-103809. hdl:10379/6762.
- ^ Margulis, L.; Chapman, M.J. 2. Kingdom Protoctista. Kingdoms and Domains: An illustrated guide to the phyla of life on Earth 4th. Academic Press / Elsevier. 2009: 116. ISBN 978-0-12-373621-5. doi:10.1016/B978-0-12-373621-5.00002-7.
- ^ Zhu, S; Zhu, M; Knoll, A; et al. Decimetre-scale multicellular eukaryotes from the 1.56-billion-year-old Gaoyuzhuang Formation in North China. Nat Commun. 2016, 7. PMC 4873660 . PMID 27186667. doi:10.1038/ncomms11500.
- ^ 存档副本. [2007-03-18]. (原始内容存档于2007-03-07).
- ^ El Albani, Abderrazak; et al. Large colonial organisms with coordinated growth in oxygenated environments 2.1 Gyr ago. Nature. 1 July 2010, 466 (7302): 100–4. PMID 20596019. doi:10.1038/nature09166.
- ^ Parfrey & Lahr 2013,第344頁
- ^ Medina, M.; Collins, A.G.; Taylor, J.W.; Valentine, J.W.; Lipps, J.H.; Zettler, L.A. Amaral; Sogin, M.L. Phylogeny of Opisthokonta and the evolution of multicellularity and complexity in Fungi and Metazoa. International Journal of Astrobiology. 2003, 2 (3): 203–211. doi:10.1017/s1473550403001551 .
- ^ Cocquyt, E.; Verbruggen, H.; Leliaert, F.; De Clerck, O. Evolution and Cytological Diversification of the Green Seaweeds (Ulvophyceae). Mol. Biol. Evol. 2010, 27 (9): 2052–61. PMID 20368268. doi:10.1093/molbev/msq091 .
- ^ Domazet-Loso, T.; Tautz, D. Phylostratigraphic tracking of cancer genes suggests a link to the emergence of multicellularity in metazoa. BMC Biology. 2010, 8 (66): 66. PMC 2880965 . PMID 20492640. doi:10.1186/1741-7007-8-66.
- ^ Wolpert, L.; Szathmáry, E. Multicellularity: Evolution and the egg. Nature. 2002, 420 (6917): 745. PMID 12490925. doi:10.1038/420745a.
- ^ Kirk, D.L. A twelve-step program for evolving multicellularity and a division of labor. BioEssays. 2005, 27 (3): 299–310. PMID 15714559. doi:10.1002/bies.20197.
- ^ AlgaeBase. Volvox Linnaeus, 1758: 820.
- ^ Margulis, Lynn. Symbiotic Planet: A New Look at Evolution. Basic Books. 1998: 160. ISBN 978-0-465-07272-9.
- ^ Hickman CP, Hickman FM. Integrated Principles of Zoology 5th. Mosby. 8 July 1974: 112. ISBN 978-0-8016-2184-0.
- ^ Nursall, J.R. Oxygen as a Prerequisite to the Origin of the Metazoa. Nature. April 1959, 183 (4669): 1170–2. Bibcode:1959Natur.183.1170N. S2CID 4200584. doi:10.1038/1831170b0.
- ^ Mills, D.B.; Ward, L.M.; Jones, C.; Sweeten, B.; Forth, M.; Treusch, A.H.; Canfield, D.E. Oxygen requirements of the earliest animals. Proceedings of the National Academy of Sciences. 2014-02-18, 111 (11): 4168–72. PMC 3964089 . PMID 24550467. doi:10.1073/pnas.1400547111 .
- ^ Brocks, Jochen J.; Jarrett, Amber J.M.; Sirantoine, Eva; Hallmann, Christian; Hoshino, Yosuke; Liyanage, Tharika. The rise of algae in Cryogenian oceans and the emergence of animals. Nature. August 2017, 548 (7669): 578–581. PMID 28813409. doi:10.1038/nature23457.
- ^ Xiao, Shuhai; Tang, Qing. After the boring billion and before the freezing millions: Evolutionary patterns and innovations in the Tonian Period. Emerging Topics in Life Sciences. 2018-09-28, 2 (2): 161–171. PMID 32412616. doi:10.1042/ETLS20170165. hdl:10919/86820 .
- ^ 26.0 26.1 Herron, Matthew D.; Borin, Joshua M.; Boswell, Jacob C.; Walker, Jillian; Chen, I.-Chen Kimberly; Knox, Charles A.; Boyd, Margrethe; Rosenzweig, Frank; Ratcliff, William C. De novo origins of multicellularity in response to predation. Scientific Reports. 2019-02-20, 9 (1): 2328. PMC 6382799 . PMID 30787483. doi:10.1038/s41598-019-39558-8 .
- ^ Smukalla, Scott; Caldara, Marina; Pochet, Nathalie; Beauvais, Anne; Guadagnini, Stephanie; Yan, Chen; Vinces, Marcelo D.; Jansen, An; Prevost, Marie Christine; Latgé, Jean-Paul; Fink, Gerald R.; Foster, Kevin R.; Verstrepen, Kevin J. FLO1 is a variable green beard gene that drives biofilm-like cooperation in budding yeast. Cell. 2008-11-14, 135 (4): 726–737. PMC 2703716 . PMID 19013280. doi:10.1016/j.cell.2008.09.037.
- ^ Oud, Bart; Guadalupe-Medina, Victor; Nijkamp, Jurgen F.; De Ridder, Dick; Pronk, Jack T.; Van Maris, Antonius J.A.; Daran, Jean-Marc. Genome duplication and mutations in ACE2 cause multicellular, fast-sedimenting phenotypes in evolved Saccharomyces cerevisiae. Proceedings of the National Academy of Sciences. 2013, 110 (45): E4223–31. PMC 3831460 . PMID 24145419. doi:10.1073/pnas.1305949110.
- ^ Bozdag, G. Ozan; Zamani-Dahaj, Seyed Alireza; Day, Thomas C.; Kahn, Penelope C.; Burnetti, Anthony J.; Lac, Dung T.; Tong, Kai; Conlin, Peter L.; Balwani, Aishwarya H.; Dyer, Eva L.; Yunker, Peter J.; Ratcliff, William C. De novo evolution of macroscopic multicellularity. Nature. 2023-05-25, 617 (7962): 747–754. PMC 10425966 . PMID 37165189. doi:10.1038/s41586-023-06052-1.
- ^ Bar-On, Yinon M.; Phillips, Rob; Milo, Ron. The biomass distribution on Earth. PNAS. 2018-06-19, 115 (25): 6506–11. PMC 6016768 . PMID 29784790. doi:10.1073/pnas.1711842115.
- ^ 31.0 31.1 Grochau-Wright ZI, Nedelcu AM, Michod RE. The Genetics of Fitness Reorganization during the Transition to Multicellularity: The Volvocine regA-like Family as a Model. Genes (Basel). April 2023, 14 (4): 941. PMC 10137558 . PMID 37107699. doi:10.3390/genes14040941 .