系統發生樹
| 演化生物学 |
|---|
 |
|

系統發生樹(英語:phylogenetic tree)又稱為種系發生樹、親緣關係樹,或演化樹(英語:evolutionary tree),是一種呈現不同物種或是同物種不同族群的個體之間親緣關係的樹狀圖。分析個體親緣關係的學術領域稱為系統發生學(phylogenetics),可應用於多個領域的研究,如支序分類學(cladistics)、流行病學(epidemiology),以及生態學(ecology)。地球上所有生命都是一个系统发生树的一部分,表明有共同的祖先。
-

-
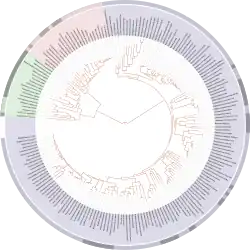 用来自191个生物物种的31个同源基因串联构建的有根树[2]。
組成
根
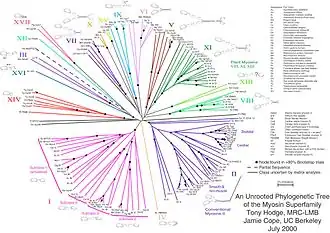
系统发育树有根树与无根树两类呈现形式。
有根树(rooted tree)包含一个明确的根,代表系统发育树中所有末端分类单元(也称叶节点或leaf nodes)的最近共同祖先;因此,一棵系统树中没有比根更早的祖先节点。有根树具有明确的演化方向[4],即表示了谱系从根部向末端单位随时间演化的过程。
无根树呈现的是末端分类单元之间的相对亲缘关系,无需预先确定或推断祖先位置,因此避免了对起源节点的假设。无根树常作为系统发育推断的基础结构,后续可通过引入外群[4]及采用速率假设(分子钟)[5]对无根树进行定根(rooting),从而得到有根树。在实际分析操作中,外群需与内群足够接近以确保可比性,但亲缘不能近到与内群混淆,应选取与内群(ingroup)具有适当亲缘关系、但明确不属于内群的生物类群。[5]
節點
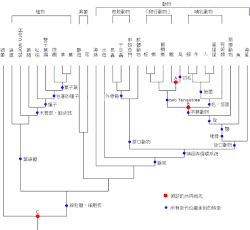
系统发育树中的節點可分為末端节点(叶)和内部节点。末端节点位于树的最外端,代表实际被采样并纳入分析的分类单元,例如不同物种或同一物种的不同样本(不同个体或序列)。内部节点则位于系统树的内部结构中,代表这些末端分类单元在演化历史的某一阶段所共享的共同祖先。需要注意的是,这些“共同祖先”是根据系统发育模型推断出的假设性节点,并非对应历史上真实存在或被直接观察到的生物实体。
分支
在系统发育树中,分支(branch)指连接两个节点的线段。在一棵完全二分的系统树中,分支的总数取决于叶节点(末端分类单元)的数量:无根树包含 2n–3 条分支,有根树包含 2n–2 条分支(其中 n 为末端单元的数量)。
每节点的分歧数量
在有根树中,若某内部节点恰好分出两个子节点,则称为二分节点(bifurcating node)。所有内部节点均为二分的树(fully bifurcating tree)代表系统发育推断中理想的高分辨率(high resolution)拓扑结构(topology)。
若内部节点的子节点多于两个,则称为多分节点(multifurcating node),也称多歧现象(polytomy)。多分节点通常反映了系统发育推算中的不确定性(soft polytomy),即无法明确判断多个类群间的先后分化顺序(例如在A、B、C三者间无法确定哪两者更为近缘)。增加序列长度、改进分子替换模型或选取演化速率更适宜的位点都可能提升拓扑的分辨率。[6]
然而,在某些情形下,多分节点也可能代表真实存在的同时分化事件(hard polytomy),但这种情况尚较罕见,且以现行分析手段较难以证明[7]。
长度单位
系统发育树的分支长度未必带有单位。若树未标出分支长度(例如仅显示拓扑),则树仅表示分类单元之间的亲缘关系结构,而不包含量化的演化差异。若树包含分支长度,则枝长所代表的意义取决于分析方法:最常见的是以“每个位点累积的替代数(substitutions per site)”表示序列间的演化距离;若进一步引入时间模型与化石校准,枝长也可转换为演化时间(详见后文“演化树定年”)。
一般而言,枝长越长表示两端节点间累积的演化变化越多;若枝长被用来表示突变速率或其他参数[8],则需依据具体模型解释。
運算
系统发育树的构建通常需要分析大量的序列数据,并借助计算系统发育学的方法。
基于距离矩阵的构树方法(如邻接法和 UPGMA)是通过比对好的序列来计算遗传距离并推断树形结构。此类方法较为简单且计算量低,除了在计算距离矩阵时会基于简化的替代模型之外,并不直接使用明确的演化模型。许多多重序列比对程序(如 ClustalW)也利用这些基于距离的简单算法生成引导树(guide tree)。
最大简约法(maximum parsimony)是另一类早期的系统发育推断方法,它采用“越少变化越好”的简约假设,易受长枝吸引效应影响,其假设并不总符合真实的分子演化过程。
现代分子系统发育学更常使用最大似然(maximum likelihood)及贝叶斯推断(Bayesian inference)的方法框架,在系统发育树估计过程中使用明确的分子演化模型。
由于基于模型的系统发育推断对计算要求极高,实际分析通常依赖各种启发式搜索(heuristic search)与优化策略,并结合树评分函数(tree-scoring functions)来寻找与数据最为相符的树或树的后验分布。
演化樹定年
系统树定年(Divergence time estimation,亦称 tree dating)指利用生物分子的突变速率(即分子钟理论)来推断两个或多个生物类群在演化历史上发生分化的时间。此类分析通常需要借助化石等实证证据进行校准,并依赖于贝叶斯统计框架下的分子演化模型。用于计算的生物分子数据一般为DNA、RNA的核苷酸序列,或蛋白质的氨基酸序列。
分子钟的基本思想(两条谱系自共同祖先分开后各自累积的突变)可以用以下最简公式表达:


分子演化速率 通常未知,且在演化过程中可能并非恒定;其变化可能来源于环境压力、世代更替用时差异、代谢速率等因素,导致速率呈现不同形式的异质性(例如逐渐增减,或不规则的快慢变化)。

由于 贝叶斯方法 能够在分析中对分子进化速率的变异进行建模(通常称为“松弛分子钟”,即 relaxed clock),并可同时整合化石校准的不确定性、给出参数的后验概率概率分布,因此成为现行分歧时间估计的主要方法框架。相比之下,最大似然法进行时间推断时往往需要依赖严格分子钟与固定速率假设,难以处理序列演化过程中的速率异质性,也无法自然结合校准误差,因此最大似然法在当代研究已很少用于分歧时间估计。
運算工具
参见:系统发育软件列表
- RAxML —— RAxML (maximum likelihood) (页面存档备份,存于互联网档案馆)
- IQ-Tree —— IQ-Tree[9][10]
- MrBayes —— MrBayes (页面存档备份,存于互联网档案馆)
- BEAST 2 —— BEAST2 (Bayesian)
- RevBayes —— RevBayes[11]
- PAUP*
- PHYLIP —— Phylip (maximum likelihood) (页面存档备份,存于互联网档案馆)
- ARB —— ARB (页面存档备份,存于互联网档案馆)
- BAMBE —— BAMBE (页面存档备份,存于互联网档案馆)
- SEMPHY —— SEMPHY (页面存档备份,存于互联网档案馆)
- PALM —— PALM
参考文献
- ^ Woese, C R; Kandler, O; Wheelis, M L. Towards a natural system of organisms: proposal for the domains Archaea, Bacteria, and Eucarya.. Proceedings of the National Academy of Sciences. 1990-06, 87 (12): 4576–4579. doi:10.1073/pnas.87.12.4576.
- ^ Ciccarelli, Francesca D.; Doerks, Tobias; von Mering, Christian; Creevey, Christopher J.; Snel, Berend; Bork, Peer. Toward Automatic Reconstruction of a Highly Resolved Tree of Life. Science. 2006-03-03, 311 (5765): 1283–1287. doi:10.1126/science.1123061.
- ^ Hodge T, Cope M. A myosin family tree. J Cell Sci. 1 October 2000, 113 (19): 3353–4. PMC 2568612
 . PMID 10984423. doi:10.1242/jcs.113.19.3353. (原始内容存档于30 September 2007).
- ^ 4.0 4.1 Root - Phylogenetics. EMBL-EBI. EMBL-EBI. [2026-01-12] (英语).
- ^ 5.0 5.1 Kinene, T.; Wainaina, J.; Maina, S.; Boykin, L.M. Rooting Trees, Methods for. Encyclopedia of Evolutionary Biology. 2016: 489–493. doi:10.1016/B978-0-12-800049-6.00215-8.
- ^ Philippe, Hervé; Brinkmann, Henner; Lavrov, Dennis V.; Littlewood, D. Timothy J.; Manuel, Michael; Wörheide, Gert; Baurain, Denis. Resolving Difficult Phylogenetic Questions: Why More Sequences Are Not Enough. PLoS Biology. 2011-03-15, 9 (3): e1000602. doi:10.1371/journal.pbio.1000602.
- ^ Phylogenetic pitchforks. Understanding Evolution. University of California, Berkeley. [2026-01-12].
- ^ Smith, Stephen A.; Donoghue, Michael J. Rates of Molecular Evolution Are Linked to Life History in Flowering Plants. Science. 2008-10-03, 322 (5898): 86–89. doi:10.1126/science.1163197.
- ^ Nguyen LT, Schmidt HA, von Haeseler A, Minh BQ. IQ-Tree: a fast and effective stochastic algorithm for estimating maximum-likelihood phylogenies. Molecular Biology and Evolution. January 2015, 32 (1): 268–74. PMC 4271533 . PMID 25371430. doi:10.1093/molbev/msu300.
- ^ Minh, Bui Quang; Schmidt, Heiko A; Chernomor, Olga; Schrempf, Dominik; Woodhams, Michael D; von Haeseler, Arndt; Lanfear, Robert. IQ-TREE 2: New Models and Efficient Methods for Phylogenetic Inference in the Genomic Era. Molecular Biology and Evolution. February 2020, 37 (5): 1530–1534. ISSN 0737-4038. PMC 7182206 . PMID 32011700. doi:10.1093/molbev/msaa015. hdl:1885/212335 .
- ^ Höhna, Sebastian; Landis, Michael J.; Heath, Tracy A.; Boussau, Bastien; Lartillot, Nicolas; Moore, Brian R.; Huelsenbeck, John P.; Ronquist, Fredrik. RevBayes: Bayesian Phylogenetic Inference Using Graphical Models and an Interactive Model-Specification Language. Systematic Biology. July 2016, 65 (4): 726–736. ISSN 1063-5157. PMC 4911942 . PMID 27235697. doi:10.1093/sysbio/syw021 (英语).
