无性生殖
| 无性生殖 | |
|---|---|
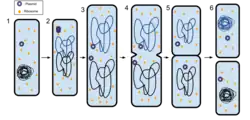 | |
| 生物過程、生物繁殖方式 | |
| 上级分类 | 繁殖  |
| 導致 | clone |
| Stack Exchange標籤 | https://biology.stackexchange.com/tags/asexual-reproduction |
| 相對概念 | 有性生殖 |
无性生殖(英語:asexual reproduction)是指生物体不通过生殖细胞的结合方式,不经由减数分裂产生配子,而直接由母体细胞分裂后产生新个体的生殖方式。[1]无性生殖产生的后代继承单一亲本的整套基因,在遗传上与亲本几乎相同(克隆)。[2]原核生物(古菌和细菌)全部以无性方式繁殖,但通过接合、转化和转导等水平基因转移机制获得类似有性重组的遗传交流。[3]
无性生殖的主要方式包括分裂生殖、出芽生殖、断裂生殖、孢子生殖、营养器官繁殖、组织培养、孤雌生殖、无融合生殖和雄核发育等。这种生殖速度通常较有性生殖快很多,但后代遗传多样性低,在环境变化时可能面临灭绝风险。
无性生殖的类型

分裂生殖
又叫裂殖,通常是单细胞生物的生殖方式。生物直接行细胞分裂后产生两个(或更多)新个体。例如:草履虫、变形虫以及多数的细菌等。某些顶复门寄生虫(如疟原虫)通过裂殖生殖(schizogony)进行多次分裂。[4]
出芽生殖
某些生物在生长过程中,个体上会长出较小的芽体,芽体经细胞分裂后形成与母体相似的形体,最终脱离母体成为独立新个体。例如:海绵、水螅、酵母菌等。内部出芽(endodyogeny)见于弓形虫等寄生虫。
断裂生殖
通常是多细胞生物受外力作用断裂成多个片段后发育为新个体。例如:海星、涡虫等。裂殖(fissiparity)在棘皮动物中常见。
孢子繁殖
有些生物能产生大量孢子,孢子通过各种管道散播到适当环境中后萌发成新个体。例如多数的霉菌、蕈类及黏菌。注意孢子繁殖不一定是无性生殖——藓苔、蕨类以及有些霉菌的孢子为减数分裂而来,属于有性生殖。
营养器官繁殖
大多数植物的生殖方式之一,植物的根、茎、叶等营养器官通过分根、嫁接、扦插等方式与母体脱离后发育成新个体。例如:甘薯利用块根、马铃薯利用块茎、落地生根和石莲利用叶、草莓利用匍匐茎、洋葱利用鳞茎等。除自然营养繁殖外,组织培养(又称克隆)是人工的无性繁殖手段,将植物组织放入含营养和激素的培养基中使其发育为新个体,常用于兰花等高价值植物的商业化生产。
孤雌生殖
孤雌生殖(parthenogenesis)指未受精的卵细胞直接发育成新个体的生殖方式,已在超过2000个物种中被记录。[1]可分为兼性孤雌生殖(facultative,雌性可同时进行有性生殖和无性生殖,如斑马鲨、科莫多龙)和专性孤雌生殖(obligate,雌性仅通过无性生殖繁殖,如沙漠草地鞭尾蜥)。[5]蚜虫等昆虫在夏季通过孤雌生殖快速繁殖,秋季再进行有性生殖(异态交替)。
无融合生殖与雄核发育
无融合生殖(apomixis)指植物不经过受精作用而形成种子的生殖方式,常见于柑橘等植物的珠心胚现象。雄核发育(androgenesis)则是一种特殊的无性生殖方式——合子只含有父本细胞核的基因,母本基因组被排除。雄核发育在蚬类、竹节虫、膜翅目昆虫以及赛普雷斯大果柏(Cupressus dupreziana)等植物中均有发现。[6]
有性生殖与无性生殖的交替
许多生物在生活史中交替进行有性生殖和无性生殖,这种现象称为异态交替(heterogamy)或世代交替。例如:蚜虫在夏季通过孤雌生殖快速增殖,秋季产生产卵雌虫和雄虫进行有性生殖;水蚤(Daphnia)在环境适宜时行孤雌生殖,在环境胁迫(如捕食压力增加)时转为有性生殖产生休眠卵;[7]植物和藻类中普遍的世代交替——配子体(有性世代)和孢子体(无性世代)交替出现——也体现了这一模式。[8]
动物中的实例
无性生殖在动物界几乎一半的门中有所发现。脊椎动物中最常见的无性生殖方式是孤雌生殖:已知科莫多龙、斑马鲨、宽纹虎鲨、双髻鲨、蟒蛇和多种鞭尾蜥均可进行兼性或专性孤雌生殖。[1]九带犰狳则通过多胚生殖(polyembryony)一胎产下遗传上完全相同的四只幼崽——即天然克隆。[9]
无脊椎动物中,蛭形轮虫(bdelloid rotifers)已在数千万年间完全放弃有性生殖,仅通过无性方式繁衍生息,并演化出独特的梅塞尔森效应来维持基因组多样性。[10]
无性生殖的适应意义
无性生殖在短期内有显著优势:每个个体均可繁殖(无“雄性成本”),种群可在短时间内快速增长,且在稳定的环境中能够高效地复制适应良好的基因型。[11]然而,有性生殖通过产生遗传多样性使后代更能适应变化的环境,同时减数分裂提供了修复DNA损伤的保护性重组机制——失去这种修复能力是无性生殖进化上的主要限制因素。[12]因此,大部分多细胞生物在生活史中保留了有性生殖环节,专性无性生殖在高等真核生物中相对罕见。
参见
參考文獻
- ^ 1.0 1.1 1.2 Fields, Andrew T.; Feldheim, Kevin A.; Poulakis, Gregg R.; Chapman, Demian D. Facultative parthenogenesis in a critically endangered wild vertebrate. Current Biology. 2015, 25 (11): R446–R447. doi:10.1016/j.cub.2015.04.018.
- ^ de Meeûs, Thomas; Prugnolle, Franck; Agnew, Philip. Asexual reproduction: genetics and evolutionary aspects. Cellular and Molecular Life Sciences. 2007, 64: 1355–1372. doi:10.1007/s00018-007-6515-2.
- ^ Thomas, Christopher M.; Nielsen, Katherine M. Mechanisms of, and barriers to, horizontal gene transfer between bacteria. Nature Reviews Microbiology. 2005, 3: 711–721. doi:10.1038/nrmicro1234.
- ^ Vickerman, K.; Cox, F. E. G. The Protozoan Cell. Biology of Protozoa (Springer). 1986: 35–89.
- ^ Booth, W.; Schuett, G. W. The evolution of parthenogenesis in reptiles. Journal of Heredity. 2011, 102 (2): 243–253.
- ^ Schwander, Tanja; Oldroyd, Benjamin P. Androgenesis: where males hijack eggs to clone themselves. Journal of Evolutionary Biology. 2016, 29: 1785–1794. doi:10.1111/jeb.12912.
- ^ Decaestecker, Ellen; De Meester, Luc; Mergeay, Joachim. Cyclical parthenogenesis in Daphnia: sexual versus asexual reproduction. Limnology and Oceanography. 2009, 54: 1375–1386.
- ^ Stebbins, G. Ledyard. Variation and Evolution in Plants. Columbia University Press. 1950: 137–145.
- ^ Newman, Robert A. Polyembryony in Armadillos. American Scientist. 2003, 91: 340–347.
- ^ Mark Welch, David B.; Meselson, Matthew. Evidence for the evolution of bdelloid rotifers without sexual reproduction or genetic exchange. Science. 2000, 288 (5469): 1211–1215. doi:10.1126/science.288.5469.1211.
- ^ Maynard Smith, John. The Evolution of Sex. Science. 1978, 200 (4344): 1002–1003.
- ^ Bernstein, Harris; Bernstein, Carol; Michod, Richard E. Meiosis as an evolutionary adaptation for DNA repair. Meiosis (IntechOpen). 2011: 1–22.