多肉植物
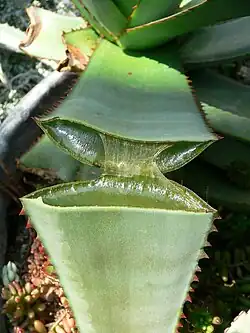
多肉植物,为一非正式植物学概念,指一类具有肥厚多汁组织的植物类群,通常能够在叶、茎或根等器官中贮水,从而应对缺水的气候或土壤条件。此类植物主要见于沙漠等低降雨量的地区及土壤水分持留度低的生境。许多多肉植物还具有其它最大化水分利用效率的适应性特征,例如退化叶片以及景天酸代谢。一些多肉植物由于外观奇特,需水量相对较少,常被作为观赏植物种植。
对于哪些植物应该被归类为多肉植物,不同领域和个人持不同观点,植物学家、园艺学家乃至业余爱好者都从自身角度出发阐释,导致“多肉植物”这一术语在实际使用中呈现出较大的弹性[1],例如具有肥厚地下贮藏器官(鳞茎、球茎或根状茎)的地下芽植物有时也被视为广义上的多肉植物[2],而生理结构上符合多肉植物定义的仙人掌科植物在园艺爱好者中则有时被与其它多肉植物区分开来,尤其是在英语中,两者常被并列统称为“仙人掌与多肉植物”[3][4][5][6]。
植物界中的许多科都包含多肉植物。多肉化性状在植物界中曾多次独立演化,但对其多样性的估计并不一致[7]。就被子植物而言,在其所包含的64个目中,具多肉化性状的类群估计涉及17[8]至32[9]个目;按科级范围统计,最多可达83个科[9];按物种数估算,则约有10000[10]至12500[9]种植物具多肉化性状。景天科、番杏科和仙人掌科的大部分成员都是多肉植物,而阿福花科、天门冬科(包含龙舌兰亚科等)、夹竹桃科(包含萝藦亚科等)以及大戟科等则同时包含相当多的多肉和非多肉物种[11]。
定义
“多肉植物”一词的出现可以至少追溯到18世纪上半叶[1]。当时,英国植物学家理查德·布拉德利将“能否压制成可保存于植物标本馆的标本”作为多肉植物的判定标准,过于多汁、难以干燥保存的植物即被视为多肉植物。这一定义更侧重标本制作中的实用判断,而非植物本身的生理特征[12]。
现代植物学中,“多肉植物”常用于描述植物营养器官的整体特征。一般而言,叶、茎、根等器官高度肉质并具有一定贮水功能的植物都可被称为“多肉”。不过,多肉植物和非多肉植物之间至今缺乏清晰、严格的量化界线,相关文献中甚至出现了“半多肉植物”这一术语[13],因此,对于植物需具备何种性状组合方可被归为多肉植物,仍未形成定论。[8]此外,不同类群的多肉植物虽然外观相似,其内部解剖结构却可能存在显著差异;即便客观上存在“多肉植物”的严格定义,也未必适用于所有科属。一些植物虽在细胞层面呈现肉质化,外部形态却并不明显,凤梨科的松萝凤梨便是一例:其细胞中具有较大的液泡,并且采用典型多肉植物的常见生理途径(景天酸代谢),但外观上并不肉质。[14]
对于肉质化部位仅存在于土壤以下的植物,如马铃薯以及多数球根花卉,是否应纳入多肉植物的定义,亦存在争议。一些观点认为,多肉植物应限于“具有肥厚肉质地上茎叶”的类群,而不应包括仅具肉质地下贮藏器官(球茎、鳞茎、根状茎)的地下芽植物[15]。然而,一些半地下茎基膨大、具有贮藏功能且有一定观赏价值的乔木、灌木和多年生藤本植物也常被园艺爱好者归入多肉的范畴,例如龟甲龙、地不容等。[16]
部分学者认为,单从形态和微观结构来定义多肉植物过于片面,还应将多肉化所对应的生理功能纳入考量。[17]例如,植株的活组织应能够贮藏可利用水分,使植株能够在不依赖外部水源的情况下仍能短期维持生理活动[18];按此定义,空气凤梨和肉质寄生植物将被排除在多肉植物之外[19];但也有学者认为,专一性寄生的肉质寄生植物仍可视为多肉植物[20]。此外,叶片短厚而硬质的高山垫状植物,以及具有肉质器官的盐生植物(如盐角草、海马齿等)有时也被纳入多肉植物范畴[21]。
一些现代研究尝试以量化方法界定多肉植物。其中,Delf指数是一种较为简明的衡量方式:该方法通过测定植物组织中的含水量,即组织在完全水合状态下的含水质量与干质量之比,来表示植株的肉质化程度[22]。此外,单位叶面积鲜重也可用于衡量叶片肉质化程度;这一指标类似比叶质量,但后者侧重叶片干重[23]。基于肉质化程度的量化研究,有学者进一步提出,多肉植物并非非此即彼的二元类别,而更接近一个连续谱系。
园艺爱好者对多肉植物的理解往往受到实际栽培和收藏习惯的影响。一个较为实用的定义是:“任何多肉植物爱好者希望种植和收藏的肉质植物”。例如,兰科和棕榈科中有不少类群在解剖学层面符合多肉植物的定义:蝴蝶兰具有肉质叶,甚至近乎全株肉质化;王棕则具有膨大的贮水茎。然而,由于兰科和棕榈科在园艺收藏中通常已形成相对独立的体系,与仙人掌、生石花、芦荟等原产干旱地区的“典型多肉植物”关联较少,因而通常不被园艺爱好者视为多肉植物。
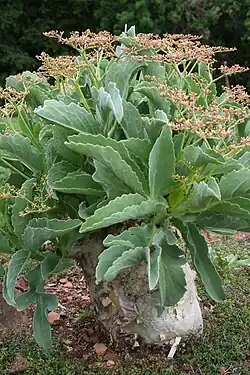
另有一些植物具有近似多肉植物的外观,原生环境也与上述典型多肉植物相近,但并不具备发达的蓄水组织,却有时仍被视作多肉植物。例如,树风雨兰和刺叶树属所谓的“块根”,实际上是由宿存的叶鞘、叶基或其他结构堆积形成的部位[24][25];拟大戟苦鳞豆虽具有较粗的同化枝且叶片退化,但在解剖结构上并不具备发达的蓄水组织[26]。
特征

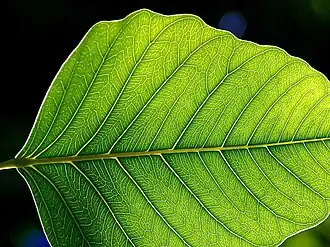
1: 角质层,
2: 叶绿薄壁组织(叶绿体丰富),
3: 储水薄壁组织(叶绿体较少),
4: 维管束
除了具有肉質化的组织外,多肉植物还常具备其它生态生理特征,且普遍与耐受干旱环境和提高水分利用率有关。
解剖与代谢特征
- 采用景天酸代謝(CAM),这种固碳途径可避免植物在炎热的白天打开气孔收集二氧化碳,导致水分以气孔为门户散失(蒸腾作用)。该途径会将夜间吸收的二氧化碳暂时固定为苹果酸的形式,因而多肉植物细胞普遍具有的大型液泡也便于酸的贮存。[27]
- 叶表面氣孔數量普遍相比非多肉植物更少[28],但气孔对环境的响应更为敏感[29]。
- 多肉组织的抗旱性在生态生理学上最明显的体现是其高水力电容(C),多肉植物的细胞或组织,尤其是特化的储水薄壁组织都具有较高的C值。这使得它们能够快速吸收和储存大量水分,并在环境水势下降时,通过释放自身存储的水分,更长时间地保持相对稳定和较高的内部水势。盐生肉质植物(稀盐盐生植物)的C值往往要低于单纯的耐旱多肉植物。[17]
- 组织含有有助于保存水的粘液物質。在干旱时期的初期阶段,组织水势下降的情况下,粘液质可借助细胞外溶质,释放可被细胞利用的水分。[30]
- 多肉植物普遍较为耐热,即使處於內部溫度很高的情況下(例如52°C或126°F),仍有能力保存水。由于其组织体积和含水量一般较高,导致其热容量也较高,再加上多肉植物常具有其它防止水分从体表流失的适应性特征,导致其通常难以通过蒸腾作用进行有效的蒸发冷却。但较高的热容量也使其在夜间温度骤降时散热较为缓慢,从而保护核心组织和夜间代谢不受低温影响[29]。
- 许多多肉组织的细胞壁通常被描述为薄且具有高度弹性。允许细胞在水势降低、细胞失水时发生可逆且频繁的体积变化,而不至于导致细胞完整性的永久性损伤。[31]
外部形态特征
- 部分类群茎呈圆柱状、圆锥状或纺锤形,有贮水功能,如仙人掌科、大戟属、萝藦亚科等。圆锥状或纺锤形的茎常见于各种块根植物。
- 一些葉多肉化的植物具有特化为圆柱形至球形的叶(如大部分景天科),表面积与体积的比值相对较低,以起到最大化贮存水分的功能,并且相对较低的叶表面积也可减少水分蒸腾流失[29]。而茎多肉植物的叶则多高度简化甚至缺失,或是于干旱期前自然凋落(如仙人掌科和大戟属)。许多无叶或少叶的类群都以莖為進行光合作用的主要器官,而不是葉,因此其茎常因富含叶绿体而呈绿色。
- 部分类群植株矮小,結構緊湊,如叶片排列为莲座状(如拟石莲属、十二卷属)或是形成墊狀(如部分长生草属和虎耳草属)[29]。
- 部分类群(如乳突球属、老乐柱属)植物表面多毛,從而降低了植物的表面附近的空氣流動,在植物周圍產生潮濕的空氣,從而減少水分流失,並建立陰影遮蔽猛烈的陽光。
- 许多种类根系较浅,贴近土壤的表面,但扩散面积较大,使植株得以吸收来自极少降雨甚至霧水的水份[29]。但也有如百岁兰等物种具备较深的直根系。
- 植株多具有较厚的角質層,降低水分蒸腾流失的物质[29]。
- 植株表面多覆盖蜡质层、蜡质粉末、细密毛被、刺状凸起等,可降低表皮的透光性,被认为是一种对强光干旱环境的适应[29]。
養護
多肉植物適應乾旱環境,對乾燥有較高耐受性。切忌過度澆水,因為過多水分會導致根部腐爛。應待土壤完全乾燥後再徹底澆水,確保水分滲透到整個根系。澆水頻率應根據植物的需求及周圍氣候條件來調整。[32][33]
大多數多肉植物喜愛明亮的間接光,可將其置於有濾光效果的窗戶旁,或在室內提供明亮的間接光源。部分品種,如沙漠玫瑰(Adenium obesum),適應後可耐全日照。觀察植物對光線的反應,並視情況調整其擺放位置。[32][33]
多肉植物通常喜歡溫暖的環境,具體溫度範圍因品種而異,但大多數植物適合的白天溫度為攝氏21°C至29°C(華氏70°F至85°F)。夜間稍低的溫度也能忍受。需避免霜凍或極端溫差,以免損害植物。[32][33]
多肉植物需使用排水良好的土壤,以防積水。大多數品種適合使用盆栽土、颗粒和沙子的混合物,园艺上常用的颗粒类介质包括硅藻土、稻壳炭、火山岩、轻石、鹿沼土、珍珠岩等,這樣能迅速排出多餘水分。避免使用保水性強的重質土壤,因為容易導致根部腐爛。部分種植者建議在盆底放置小石子或砂礫,以增強排水效果。[32][33]球兰、眼树莲等森林性多肉植物的介质则可以参考附生兰等植物。
多肉植物在生長期適合定期施肥。可使用平衡的水溶性肥料,稀釋至半濃度,每月施一次,或根據植物需求進行調整。休眠期則應減少或停止施肥。[32][33]
栽培史


欧美地区
欧洲对仙人掌类多肉植物的兴趣可追溯至15世纪左右的地理大发现时期。克里斯托弗·哥伦布发现美洲后,西半球的植物逐渐被引入欧洲,其中包括较早进入欧洲栽培体系的花座球属等多肉植物[34]。到了18世纪,随着博物学探险活动的兴起,仙人掌及其他多肉植物因其形态奇特而受到富裕收藏家和植物园的关注,被作为珍奇植物加以引种和栽培。[35]1845年,英国皇家植物园邱园建成专门的多肉植物馆[36],其藏品后整体迁入园内的威尔斯王妃温室系中保存与展示。
在早期出版物方面,英国植物学家理查德·布拉德利于1716年出版《多肉植物史》(Historia Plantarum Succulentarum),系统记录了芦荟、佛甲草等多肉植物[37]。19世纪末,威廉·沃森于1889年出版《业余仙人掌栽培》(Cactus Culture for Amateurs),被认为是最早面向业余爱好者的多肉植物栽培指南之一。
20世纪初,多肉植物类群相关的研究进入系统性整理阶段。1919年至1923年,美国植物学家纳撒尼尔·布里顿与约瑟夫·纳尔逊·罗斯完成了四卷本专著——《仙人掌科》(The Cactaceae)。该作对仙人掌科的分类体系进行了大幅修订,并配有大量由英国植物科学画师玛丽·艾米丽·伊顿绘制的插图,对后世分类学与园艺研究产生了深远影响。[36]
第二次世界大战期间,全球范围内的植物学研究和园艺活动普遍受挫,许多珍稀的种质资源和标本都在战火中丢失,一些重要的园艺组织亦在这段时间被迫解散或暂停运作。战后,多肉植物研究逐步恢复。[36]1945年8月,英国的约克郡仙人掌协会(Yorkshire Cactus Society)在德国宣布无条件投降后不久成立,并于翌年3月创刊《约克郡仙人掌杂志》,刊载了光山属、岩牡丹属等多种至今仍广泛栽培的仙人掌类群[38]。该协会随后与隶属英国皇家园艺协会的大英仙人掌与多肉协会(The Cactus and Succulent Society of Great Britain)合并,发展为现今的英国仙人掌与多肉协会,持续从事多肉植物的研究、保护、栽培推广等活动。[36]
在国际范围内,类似的学术与园艺组织亦相继成立,例如1929年在加州帕萨迪纳创立的美国仙人掌与多肉协会,以及1892年成立于柏林的德国仙人掌协会,共同推动了多肉植物在分类学、园艺学和公众层面的传播与发展。
东亚地区
东亚地区最早接触到的外来多肉植物主要是芦荟和仙人掌,芦荟最早传入中国的时间及来源不明,较早的文字记载包括唐代甄权《药性论》(“卢会”)、陈藏器《本草拾遗》(“讷会”)等。[39],多取其叶入药用。而仙人掌早在1591年就已经在中国出现[40],并在17世纪后期从中国传入日本。但这些仅仅只是零碎地接触,真正让东亚地区进入系统化栽培时期的标志却是明治维新后日本的全面对外开放。
日本
进入昭和时期,随着玻璃温室建筑技术的成熟和欧洲现代园艺书籍的翻译引进,一批具有深厚园艺底蕴的专业苗圃应运而生。成立于1930年(昭和5年),至今仍在运营的“鹤仙园”是日本仙人掌界最具代表性的机构之一[41],群仙园、芳香园等则在二战前后兴起;这些苗圃对日本甚至是全球的多肉植物行业都带来了深远影响。受日本文化影响,家族化经营的现象在这些苗圃当中也普遍存在。
二战结束后,随着日本经济的复苏, 国民的消费焦点开始从生存资料转向精神生活,多肉植物在日本的发展也随之步了黄金时代。随着收藏规模的扩张与品种的日益丰富,单纯的兴趣爱好已难以满足行业发展,多肉植物领域向组织化和学术化的转型遂成为必然趋势。一批具有专业性的多肉植物机构在此期间成立:1965年,男庭氏创立了“日本多肉植物协会” 并在随后数十年中演变为具有社会影响力的NPO法人机构[42]。1968年,日本国际多肉植物协会(ISIJ) 受到美国国际多肉植物协会(ISI,现隶属于亨廷顿植物园) 启发成立[43]。它们成为连接专业苗圃、收藏家与普通爱好者的桥梁,促进了栽培技术的传播。[44]
日本独特的火山地质资源在园艺上的优势也被发掘,赤玉土、鹿沼土等火山碎屑物质以其性能在多肉、盆景等栽培领域中得到了高度认可[45]。1950年代,许多日本园艺企业开始采掘和销售赤玉土、鹿沼土矿物,并引入了独特的高温热风干燥工艺,以增强颗粒的结构稳定性,防止其在频繁灌溉中过快粉碎[46]。在开采利用的基础上还建立了全球分销渠道和工业化分级制度扩大市场。[45]
在传统经验的基础上,日本园艺界开始深度介入十二卷属、星球属、生石花属等多肉植物的引种、育种、保种领域,做出诸多贡献的同时逐步垄断了这些领域的话语权。[47]日本育种者习惯于为多肉植物赋予具有浓厚文化色彩的汉字名称,也被中国大陆等引种地广泛接受和采纳。
中国大陆
中国大陆对多肉植物的非经济性、规模化的引入始于20世纪中期:1959年,在归国华侨周才喜等人的倡议下,厦门华侨亚热带植物引种园在鼓浪屿成立,般若等具有观赏价值的仙人掌品种在此期间进入厦门[48]。形成了早期的多肉植物集中展示区,并通过民间馈赠形成小规模流通。此前,在厦门日占时期,也有亲日的台湾富商将仙人掌科植物带入厦门,主要作为奢侈商品消费。[49]
文化大革命期间,受意识形态影响,许多私人收藏的多肉植物被贴上“小资产阶级情调”的标签,视为“毒草”而遭到销毁。植物园的科研工作也在此期间停滞。尽管如此,一部分火种仍然在这种极端条件下被保留了下来[49]。直到改革开放后,多肉植物在中国才重新起步。
2010年前后,中国大陆的多肉植物行业经历了爆发式发展。多肉植物以其“可爱、低维护、耐运输[50]”的标签迅速进入公众视线。在综合社交媒体彻底兴起前,许多与多肉植物有关的垂直社区在此期间成立,并成为当时讨论多肉植物和进行线上交易的主要途径。[50]
伴随着多肉植物市场的繁荣,中国本土的生产产业迅速扩张,并已在多省形成成熟的规模化产区,其中以云南省北部和福建省漳州市最具代表性。云南省北部得天独厚的气候条件,极有利于景天科植物的持续生长与显色次生代谢产物积累(即“上色”)[51]。依托此环境优势,当地对观赏性景天科植物进行了高度的商业化开发:自2014年起,云南种植规模呈爆发式增长;截至2022年,全省多肉种植面积已突破6000亩[50]。另一方面,基于气候优势发展出托管模式,形成了规模化的多肉植物寄养产业。[51]在销售端,当地借力短视频与直播电商模式,有效解决了传统网购的部分痛点并显著提升了销量[52],与此同时,这些景天科物种及品种不仅用于对外销售,也被纳入了云南本地的城乡露地绿化体系之中[53]。福建省漳州市则依靠深厚的产业积淀与优越的地理位置,以规模化、工业化生产成为国内仙人掌科、天门冬科、大戟科等多肉植物的主要产地[54]。
演化
演化特征
多个植物科都分别独立演化出了肉质化的营养器官,并且许多都伴随着演化辐射,与新出现的大面积半干旱气候区密切相关,因此,肉质化也被认为是一种驱动谱系扩张、改变其生态适应幅度的演化创新,即打开了原本竞争较少的生态位空间,从而为拓殖和多样化提供了契机[55]。仙人掌科、番杏科、大戟属、龙舌兰属等多肉类群的快速多样化都平行发生于渐新世晚期至中新世晚期全球气候干旱化的背景下,在时间上相近的选择压力影响下形成现今的多样性格局[56]。
不同多肉植物类群在物种丰度上存在显著差异。例如,禾本科仅有两种多肉植物——玉指草和多浆老挝竹,而其他一些单子叶植物科则有多达数百种多肉植物,例如天门冬科的龙舌兰属和阿福花科的芦荟属。因此,多浆老挝竹和玉指草可能体现了肉质化这一特征在禾本科中的演化盲端[1]。
演化驱力
干旱胁迫(包括高渗环境造成的生理干旱)通常被认为是多肉化性状演化的一大重要选择压力。多肉组织能够储存较多水分,从而在一定程度上缓冲外界水分供应波动环,并提高了植物在缺水期维持生理活动和存活的能力[57]。然而,仅以抗旱适应解释多肉植物的演化,难以充分涵盖其生态类型的广泛多样性及其对特定生境的高度分化。多肉化形态的形成,可能实际也与植物对多种相互重叠的环境限制因素的响应有关;除干旱胁迫以外,还有离子胁迫或盐胁迫、温度胁迫以及低养分环境中的营养限制等因素[17]。
在盐渍化的荒漠和半荒漠地区,植物常长期面临渗透胁迫。较高的土壤盐分会降低土壤水势, 从而限制植物对水分的吸收;与此同时,进入植物体内的盐离子还可能造成离子毒害。[58]对于稀盐盐生植物而言,多肉化可通过增大液泡体积,为盐离子的隔离提供空间。植物将过量盐离子区隔化于储水组织,如肉质茎或肉质叶的中央大液泡中,有助于维持细胞质内较低的离子浓度和正常代谢功能。与此同时,液泡内溶质浓度的升高可降低细胞水势,使植物在外界盐分较高的条件下仍能维持一定的水分吸收能力。[59]
地理与生态
多肉植物几乎分布于全球各地,但多样性中心呈现明显的地理聚集性。有学者将多肉植物物种多样性较高的地区归纳为十个主要热点区域,每个热点区域均与特定的多肉植物类群密切相关,分别为北美洲、中美洲、西安第斯高原、巴西旱生多刺灌丛群系、地中海盆地、伊朗-安娜托利亚、东非与阿拉伯半岛、非洲东南及马达加斯加、非洲多肉卡鲁、澳大利亚[60]。这些热点地区大多位于海拔1000米以下的大陆性、地中海型或热带气候带内。部分地区全年有明显的旱雨周期(如马达加斯加和东非),雨季降水量可达500毫米。而在北美、伊朗及阿拉伯半岛等更干旱的典型沙漠地区,年降水量普遍低于300毫米[61][62]。
美洲

美洲大陆是仙人掌、龙舌兰等多肉植物的原产地,这些类群的许多成员都是世界范围内重要的经济作物和观赏花卉。
在北美西南部的沙漠与半沙漠地区,茎部多肉的仙人掌科以及叶片多肉的龙舌兰亚科和景天科植物最具代表性、种类丰富。在墨西哥和美国西南部,龙舌兰亚科的龙舌兰属和丝兰属常与仙人掌混生,形成独特的北美荒漠植被景观[63]。 美国的约书亚树国家公园是此类景观的代表,它由莫哈韦沙漠和科罗拉多沙漠两地交汇构成,貿易中流通的许多来自龙舌兰亚科和仙人掌族(俗称团扇)的植物都可以在这里被找到。
墨西哥下加利福尼亚半岛的龙舌兰物种具有高度特有性(23个种中有22个是特有种)[64]。这种特有性可以归因于该地区的狭长地带,以及科罗拉多河与加利福尼亚湾阻断了当地龙舌兰与北美大陆龙舌兰种群的基因交流[64]。 分子证据显示,半岛特有种的叶绿体DNA未与大陆种出现显著分化,但形态与分布的差异表明生态隔离主导了这些物种的形成[64]。 这种地理隔离也促进了当地植物的适应性辐射,使得该地区成为研究干旱环境下物种演化过程的范本。

中美洲及安第斯山脉西北部的森林中聚集了大量耐荫仙人掌科植物,主要类群包括量天尺族量天尺族(如昙花、量天尺、蛇鞭柱)、丝苇族(如丝苇、蟹爪兰)以及其它具附生习性的类群。除仙人掌科外,凤梨科(主要为铁兰属)和兰科中部分具有多肉特征的附生植物在该区域亦较为常见,且广泛分布于整个新热带界[65]。常绿热带雨林的林冠层通常通风良好且基质贫瘠,水分获取相对困难,为附生植物的生存构成显著的环境压力,进而促成了多种具贮水能力的多肉附生植物的演化[66]。
巴西的旱生多刺灌丛与亚热带岩原草原群系也拥有大量的特有茎多肉植物,如仙人掌、大戟科、夹竹桃科、锦葵科等[67],但该地区的植被近年来也面临森林退化、过度采集、放牧生产等诸多人为干扰[68]。
非洲

位于非洲南部的多肉卡鲁生态区系是全球多肉植物多样性最高的区域,主要分布于南非北开普省和西开普省北部以及纳米比亚南部地区,地形上多为平坦至缓起伏的沉积岩台地和平原,高度一般低于800米,东部邻近山地时最高可达1500米。该区系拥有极为丰富的番杏科、夹竹桃科、景天科、阿福花科、块根植物和地下芽植物,全世界约16%的多肉物种都在此聚集,当地的一年生花卉和昆虫种类亦十分丰富。[69]

马达加斯加岛则以块根植物、大戟科及龙树科植物为代表,同时有着夹竹桃科的多种肉茎植物(如非洲霸王树、惠比须笑、亚阿相界),全球广布的景天科伽蓝菜属约三分之一的物种多样性也分布于此,葫芦科的沙葫芦属和碧雷鼓属也是该岛的特有多肉类群[70]。该岛虽然靠近非洲大陆,但因其独特的板块历史孕育了独特的植物群系,岛上的多肉植物,例如极具代表性的龙树科亚龙木属、枝龙木属、刺戟木属和曲龙木属,都主要分布在西南部的热带干湿季气候区[71]。
欧亚大陆

位于北非和欧洲之间的马卡罗尼西亚群岛拥有特殊的地质与气候条件,孕育了丰富的多肉植物类群,且出现了大戟科以及景天科部分内部类群的演化辐射,分别包括大戟属的无叶组Sect. Aphyllis[72]、凤仙戟组Sect. Balsamis[73]以及莲花掌属[74][75]、爱染草属[76]、魔南景天属[76]等,典型代表种包括山地玫瑰、甜胶大戟、魔杖吊灯花、龙血树、夹竹桃叶仙人笔等[77]。诸多物种呈现岛屿巨型化或木质化[78]现象,许多物种的株型呈多分枝烛台状,部分植株高度可达2米以上,该现象的成因可能为谱系拓殖初期岛上生态位一般较为空缺[79],为适应性演化提供了空间。例如墨麒麟是该地区仅有的几种“类仙人掌”的肉质大戟之一,外形高大壮观,引人注目。[77]

欧亚较内陆山区的代表性多肉则为景天科的长生草属、景天属及瓦莲属,红景天属也有分布。伊朗-安娜托利亚植物区则是藜亚科和蒺藜科多肉盐生植物最多样的地区。
亚洲东部的多肉多样性相对热点地区较低,但也有红景天属这样多样化程度较高的类群分布,以喜马拉雅山一带为多样性中心[80]。此外,瓦松属、景天属在此也有着较高多样性,石莲属、孔岩草属等特有类群也在此分布。
亚洲东南部的热带与亚热带森林是多类具有附生习性的多肉植物的重要产区,主要分布有兰科、萝藦亚科(眼树莲属、球兰属)、苦苣苔科(如芒毛苣苔属、石蝴蝶属)以及茜草科(蚁巢木属、蚁寨属等)的多肉植物。大多生长于雨水径流迅速且贫瘠的树干或石灰岩壁上。[81]其中许多植物已演化为蚁栖植物,与蚂蚁形成了互惠共生关系。
亚洲东部珊瑚礁海岸与基岩海岸以旋花科的厚藤[82]、景天科的伽蓝菜属(如台南伽蓝菜)[83]以及千屈菜科的水芫花等耐盐多肉植物为该地区的代表性类群[84],仙人掌和狭叶龙舌兰[85]等外来的多肉植物亦常逸生于此,其原生分布同样与海岸带密切相关。
澳洲

许多附生性的多肉植物都以澳洲为分布中心,澳大利亚东北部及新西兰湿润森林地区分布着萝藦亚科(如眼树莲属、球兰属)、茜草科(如蚁巢木属)、兰科及水龙骨科等类群,环境条件与植物种类大体与东洋界的热带与亚热带森林类似。该地区的沿海沙地则广布着番杏科的耐盐植物(如海榕菜属)。
澳洲的干旱地区主要集中在澳大利亚本土,该地区以锦葵科的瓶干树属和阿福花科的刺叶树属为代表,兼具许多盐生和耐旱的多肉植物,如锦葵科的蛇鞭葵属[86]等。尽管如仙人掌般茎高度肉质化的植物类群在该地区的多样性较为有限,水卷耳科澳红娘属的叶多肉植物及小型地下芽植物却十分丰富[87]。其中就澳大利亚就拥有400多种多肉植物[88]。
南极洲

南极洲是七大洲当中唯一不包含多肉植物多样性热点区域的大陆。该地区目前仅有一种原生的多肉植物——南极漆姑草。由于南极洲极端的环境条件,大多数种子植物都无法在此生存。全境超过90%以上的露地被永久冰盖覆盖,无冰雪常年覆盖的区域占比不到1%,主要集中在南极半岛及临近岛屿的海岸线附近,这些区域亦为南极漆姑草提供了有限的栖息环境[89]。目前南极漆姑草已知的分布最南端为南纬68°,位于北亚历山大岛一带。
面对强风、极低温等严酷的气候压力,南极漆姑草演化出典型的低矮垫状生长型态,以降低风剪力并保持温度。此类生长型态亦使其根系贴近地表,有助于吸收有限的表层土壤水分。其叶片呈肉质化,富含栅栏组织,有助于提升在低光条件下的光合效率。此外,该物种体内积累大量类黄酮类化合物,并与特定内共生微生物形成互利关系,共同增强对高强度紫外辐射的防御能力[90]。实验研究显示,在用酶抑制剂阻断类黄酮生物合成时,植株会表现出显著的氧化胁迫反应,显示类黄酮在其抗逆机制中具有关键作用。
南极漆姑草在南极洲之外也有分布,其原生分布范围亦广泛延伸至南美洲西岸的高山湿地生态系统,并在墨西哥中部出现间断分布。[91]来自南极沿海地区与安第斯山脉的居群在形态特征和生活史策略上存在明显差异,且其基因组层面的遗传结构亦表现出显著分化,反映出不同生态环境下的长期适应与遗传隔离。[92]
类群


.png)




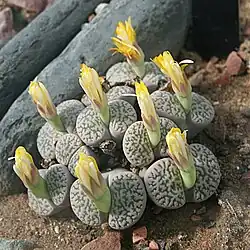


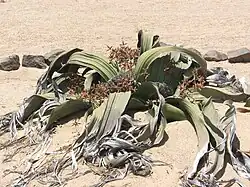
以下列出包含广义多肉植物的主要科以及其下较有代表性的多肉植物属和种。除裸子植物外,分类及科的排列顺序依据被子植物APG IV分类法。请注意,此处列出的科属许多都同时包含多肉和非多肉物种,并非仅含多肉植物。
(对于是否列为多肉植物存在明显争议的类群,用*标注)
木兰类
胡椒目
- 胡椒科:草胡椒屬
单子叶植物
泽泻目
- 天南星科:美鐵芋屬、立葉蔓綠絨等
薯蓣目
- 薯蓣科:薯蓣属
天门冬目
- 兰科*:石斛属(如苦瓜石斛)、美冠兰属(如硬叶美冠兰)、香荚兰属、石豆兰属(如Bulbophyllum shepherdii)、僧兰属(如蛇皮兰)等
- 阿福花科 :蘆薈屬、绫锦芦荟属、十二卷屬、鲨鱼掌属、什锦芦荟属、须尾草属(又名鳞芹属)、松塔掌属、刺叶树属等
- 天门冬科(含风信子科、龙舌兰科):龍舌蘭屬(含龙香玉属)、絲蘭屬、哨兵花属、虎眼万年青属、油点百合属等
- 石蒜科:灯台百合属、垂筒花属、香果石蒜属、蓝色孤挺花属、朱顶红属*
棕榈目
- 棕榈科*:玛雅椰属(如戈麦斯玛雅椰,俗称墨西哥酒瓶椰)等
- 鼓槌草科:蓬草树属(单型属)等
鸭跖草目
- 鸭跖草科:锦竹草属(如重扇锦竹草)、竹叶菜属(如索马里竹叶菜Aneilema somaliense)等
禾本目
真双子叶植物
毛茛目
- 罂粟科:肉烟堇属(如厚叶肉烟堇Sarcocapnos crassifolia)、矮罂粟属等
- 防己科:千金藤属(如金线吊乌龟、地不容)、青牛胆属、安春藤属
虎耳草目
- 虎耳草科:虎耳草属(如垫状虎耳草)等
- 景天科(几乎全部):伽蓝菜属(包含落地生根属)、八宝属、景天属、红景天属、石莲属、拟石莲花属、瓦松属等
- 小二仙草科:狐尾藻属(如Myriophyllum votschii)
葡萄目
- 葡萄科:葡萄瓮属、白粉藤属(如方茎白粉藤)等
葫芦目
豆目
- 远志科:远志属(如Polygala salasiana)、荆远志属等
- 豆科:刺桐属(如澳洲蝙蝠刺桐)、凤凰木属(如矮凤凰木,又称普米拉凤凰木)、决明属(如沙漠苏木)、苦豆属、珊瑚雀枝属、儿茶属(如黑猴刺树)等
蔷薇目
蒺藜目
- 蒺藜科:驼蹄瓣属、狒狒蓬属、沙锤草属
金虎尾目
酢浆草目
- 酢浆草科:酢浆草属(如棒叶酢浆草)
十字花目
- 辣木科:辣木属(如象腿树)
- 番木瓜科:异木瓜属(如块根异木瓜)、徒木瓜属等
- 藜木科:藜木属
- 环蕊木科:环蕊木属(如Gyrostemon racemiger)
- 十字花科:海滨芥属(如海滨荠)、蝉翼荠属(单型属,又名大地翅膀)等
牻牛儿苗目
- 牻牛儿苗科:天竺葵属、龙骨葵树、凤嘴葵属
锦葵目
- 锦葵科:猴面包树属[94]、酒瓶树属、番木棉属(如龟纹木棉)、瓜栗属(如古巴瓜栗Pachira cubensis,瓜栗*等)、吉贝属、木棉属*、纺锤树属、梧桐属(如火桐)、卧葵属、苹婆属(如非洲丽苹婆)、大梧属等
桃金娘目
- 野牡丹科:酸脚杆属(如马达加斯加酸脚杆)
无患子目
- 白刺科:红茄蓬属、算珠蓬属、白刺属(如泡泡刺)
- 橄榄科:乳香属(娜娜乳香)、裂榄属(如芬芳橄榄)、没药树属、角榄属
- 漆树科:盖果漆属(如列加氏漆树)、白榄漆
- 无患子科:红栾属
- 楝科:Entandrophragma caudatum等
石竹目
- 苋科:盐角草属、碱蓬属、澳海蓬属、梭梭属等
- 番杏科(几乎全部):生石花属、日中花属(如冰叶日中花、心叶日中花)、肉锥花属、番杏属、鹿角海棠属、海马齿属等
- 粟米草科:漆姑粟草属
- 水卷耳科:红娘花属等
- 龍樹科:除缨苋树属有争议以外,其余皆为多肉植物
- 落葵科:落葵属、落葵薯属
- 土人参科:土人参属、毛栌兰属等
- 馬齒莧科:馬齒莧屬
- 回欢草科:回欢草属、马齿藤属等
- 仙人掌科(全部):仙人掌属、量天尺属(如火龙果)、昙花属、仙人指属(如蟹爪兰)等
杜鹃花目
- 福桂树科:福桂树属
龙胆目
茄目
唇形目
- 苦苣苔科:岩桐属(如断崖女王)、袋鼠花属等
- 唇形科:鞘蕊属(如卧地延命草Coleus prostratus、俗称“碰碰香”的哈迪耶鞘蕊花)等
- 狸藻科*:捕虫堇属
- 胡麻科:钩刺麻属(如黄花胡麻Uncarina grandidieri)、佛肚麻属、刺麻木属等
菊目
- 菊科:原千里光屬部分成员(现翡翠珠属、仙人笔属等)、肉敦菊屬、好望菊属、千里光属)等
裸子植物
參考文献
- ^ 1.0 1.1 1.2 Males, Jamie. Secrets of succulence. Journal of Experimental Botany. 2017-04-01, 68 (9) [2025-05-10]. ISSN 0022-0957. doi:10.1093/jxb/erx096.
- ^ Mark Dimmitt. Definition of a Succulent. Arizona-Sonora Desert Museum. Arizona-Sonora Desert Museum. [2025-05-28].
- ^ Jacobsen Handbook op.cit. Volume 3 P. 1259
- ^ Miles Anderson. Cacti and Succulents : Illustrated Encyclopedia. Oxford: Sebastian Kelly. 1999. ISBN 978-1-84081-253-4.
- ^ Hans Hecht. Cacti & Succulents. New York: Sterling. 1994. ISBN 978-0-8069-0549-5.
- ^ Terry Hewitt. The Complete Book of Cacti & Succulents. London: Covent Garden Books. 1993. ISBN 0789416573.
- ^ Grace, Olwen M. Succulent plant diversity as natural capital. PLANTS, PEOPLE, PLANET. 2019-10, 1 (4): 336–345. doi:10.1002/ppp3.25.
- ^ 8.0 8.1 Ogburn, R. Matthew; Edwards, Erika J. The Ecological Water-Use Strategies of Succulent Plants. Advances in Botanical Research. 2010, 55: 179–225. doi:10.1016/B978-0-12-380868-4.00004-1.
- ^ 9.0 9.1 9.2 Nyffeler, R; Eggli, U. An up-to-date familial and suprafamilial classification of succulent plants. 2010. doi:10.5167/uzh-35243.
- ^ Smith, G. (编). List of southern African succulent plants.. Umdaus Press. 1997.
- ^ Dimmitt, Mark. The Tucson Cactus and Succulent Society. www.tucsoncactus.org. [5 February 2017]. (原始内容存档于22 August 2017).
- ^ Evolution sukkulenter Pflanzenfamilien: = Evolution of succulent plant families. Oldenburg: Isensee. ISBN 978-3-89995-752-5.
- ^ Succulents. www.desertmuseum.org. [2025-05-10].
- ^ Kluge, M.; Lange, O. L.; Eichmann, M. v.; Schmid, R. [CAM in Tillandsia usneoides: Studies on the pathway of carbon and the dependency of CO2-exchange on light intensity, temperature and water content of the plant]. Planta. 1973, 112 (4): 357–372 [2025-05-28]. doi:10.1007/BF00390308.
- ^ Beentje, Henk J. The Kew plant glossary: an illustrated dictionary of plant terms. Kew: Royal botanic gardens. 2010. ISBN 978-1-84246-422-9.
- ^ Martin, Margaret J.; Chapman, Peter R. Succulents and their cultivation. London: Faber & Faber. ISBN 978-0-571-10221-1.
- ^ 17.0 17.1 17.2 The Ecological Water-Use Strategies of Succulent Plants 55, Academic Press: 179–225, 2010-01-01 [2025-12-15] (美国英语)
- ^ von Willert, D. J.; Eller, B. M.; Werger, M. J. A.; Brinckmann, E. Desert Succulents and Their Life Strategies. Vegetatio. 1990, 90 (2): 133–143. ISSN 0042-3106.
- ^ 谢维荪. 多肉植物栽培原理与品种鉴赏. 上海科学技术出版社. 2011: 1–2. ISBN 9787547805404.
- ^ 引用错误:没有为名为
:1的参考文献提供内容 - ^ Heyduk, Karolina. The genetic control of succulent leaf development. Current Opinion in Plant Biology. 2021-02, 59: 101978. doi:10.1016/j.pbi.2020.11.003.
- ^ Ogburn, R. Matthew; Edwards, Erika J. Quantifying succulence: a rapid, physiologically meaningful metric of plant water storage. Plant, Cell & Environment. 2012-09, 35 (9): 1533–1542. doi:10.1111/j.1365-3040.2012.02503.x.
- ^ 王文卿、王瑁. 中国红树林. 科学出版社. 2007: 57. ISBN 978-7-03-018633-1.
- ^ WHICH PLANTS ARE CAUDICIFORMS?. bihrmann.com. [2025-05-31].
- ^ Grass Trees (Xanthorrhoea). Bush Heritage Australia. [2025-05-31] (英语).
- ^ Australian Succulents - Daviesia euphorbioides. australiansucculents.com. [2025-05-31].
- ^ Niechayev, Nicholas A; Pereira, Paula N; Cushman, John C. Understanding trait diversity associated with crassulacean acid metabolism (CAM). Current Opinion in Plant Biology. 2019-06, 49: 74–85. doi:10.1016/j.pbi.2019.06.004.
- ^ Strobel, David; Sundberg, Marshall. Stomatal Density in Leaves of Various Xerophytes: A Preliminary Study. Journal of the Minnesota Academy of Science. 1983-01-01, 49 (2): 7–9. ISSN 0026-539X.
- ^ 29.0 29.1 29.2 29.3 29.4 29.5 29.6 Griffiths, Howard; Males, Jamie. Succulent plants. Current Biology. 2017-09-11, 27 (17): R890–R896. ISSN 0960-9822. doi:10.1016/j.cub.2017.03.021 (English).
- ^ NOBEL, PARK S.; CAVELIER, JAIME; ANDRADE, JOSE LUIS. Mucilage in Cacti: Its Apoplastic Capacitance, Associated Solutes, and Influence on Tissue 5. Journal of Experimental Botany. 1992-05-01, 43 (5): 641–648 [2025-05-29]. ISSN 0022-0957. doi:10.1093/jxb/43.5.641.
- ^ Fradera-Soler, Marc; Grace, Olwen M.; Jørgensen, Bodil; Mravec, Jozef. Elastic and collapsible: current understanding of cell walls in succulent plants. Journal of Experimental Botany. 2022-04-18, 73 (8) [2025-12-15]. ISSN 1460-2431. PMC 9015807
 . PMID 35167681. doi:10.1093/jxb/erac054.
- ^ 32.0 32.1 32.2 32.3 32.4 The Fascinating World of Caudex Plants and Care Tips. Thursd. [2024-11-20]. (原始内容存档于2025-01-25).
- ^ 33.0 33.1 33.2 33.3 33.4 長田研, 全年度塊根植物栽培基礎書, 由林麗秀翻译, 噴泉文化, 2023
- ^ Cactus Corner Project - History. theinkrag.com. [2025-05-11].
- ^ Cactus and Succulent History. members.tripod.com. [2025-05-11].
- ^ 36.0 36.1 36.2 36.3 History of Growing Cacti & Succulents in Britain :British Cactus and Succulent Society. bcss.org.uk. [2025-05-11].
- ^ CONTENTdm. digitalcollections.usfca.edu. [2025-05-11].
- ^ The Yorkshire Cactus Journal. www.jstor.org. [2025-05-11] (英语).
- ^ 芦荟 - 中药材 - 中医世家. www.zysj.com.cn. [2025-05-28].
- ^ George Thomson. Early succulents in Japan and the first illustration of a cactus. BioOne. 2025-04-24 (英语).
- ^ 当園について. 鶴仙園. [2025-12-27] (日语).
- ^ NPO法人日本多肉植物の会. NPO法人日本多肉植物の会. [2025-12-27] (日语).
- ^ 国際多肉植物協会. isij.net. [2025-12-27].
- ^ 入会案内. NPO法人日本多肉植物の会. [2025-12-27] (日语).
- ^ 45.0 45.1 Dupuich, Jonas. All about akadama - Bonsai Tonight. bonsaitonight.com. 2016-07-15 [2025-12-27] (美国英语).
- ^ Introduction of AKADAMA and KANUMA-TUCHI. www.tachikawa-heiwa.com. [2025-12-27].
- ^ Volume 54 - IPPS International. IPPS. [2025-12-27] (美国英语).
- ^ 祝佳. 张行 明艳林:新中国华侨植物引种历史..._国史网. www.hprc.org.cn. [2025-12-27]. (原始内容存档于2024-08-15).
- ^ 49.0 49.1 王成聪. 厦门植物园仙人掌与多肉植物的引种驯化回顾与展望. 中国植物学会. 2006.
- ^ 50.0 50.1 50.2 打开多肉成名史,看植物圈“顶流”如何诞生?. m.thepaper.cn. [2025-12-27]. (原始内容存档于2023-04-25).
- ^ 51.0 51.1 大陸瘋養多肉植物 雲南掀寄養商機. Yahoo News. 2022-01-27 [2025-12-29] (中文(臺灣)).
- ^ 美丽产业 花开晋宁. www.moa.gov.cn. [2025-12-27].
- ^ 云南的绿化带,你别太“离谱”了……. peking.bjd.com.cn. [2025-12-29].
- ^ 小盆栽里藏“新”意_ 全省资讯_福建省人民政府门户网站. www.fujian.gov.cn. [2025-12-27].
- ^ Donoghue, Michael J.; Sanderson, Michael J. Confluence, synnovation, and depauperons in plant diversification. New Phytologist. 2015, 207 (2): 260–274 [2025-05-29]. doi:10.1111/nph.13367.
- ^ Arakaki, Mónica; Christin, Pascal-Antoine; Nyffeler, Reto; Lendel, Anita; Eggli, Urs; Ogburn, R. Matthew; Spriggs, Elizabeth; Moore, Michael J.; Edwards, Erika J. Contemporaneous and recent radiations of the world's major succulent plant lineages. Proceedings of the National Academy of Sciences. 2011-05-17, 108 (20): 8379–8384 [2025-05-29]. doi:10.1073/pnas.1100628108.
- ^ Males, Jamie. Secrets of succulence. Journal of Experimental Botany. 2017-04-01, 68 (9) [2025-12-15]. ISSN 1460-2431. PMID 28369497. doi:10.1093/jxb/erx096.
- ^ 卢福浩; Fuhao, L. U.; 沙衣班·吾布力; Shayiban·Wubuli; 刘深思; Shensi, L. I. U.; 徐贵青; Guiqing, X. U. 根深决定不同个体大小梭梭对夏季干旱生理响应的差异. www.ecologica.cn. 2021-04-25 [2026-01-09] (cn).
- ^ Lilong Wang , Yuqiang Li , Xuyang Wang , Yulong Duan , Chengzhuo Zheng. Halophytic succulence is a driver of the leaf non-structural carbohydrate contents in plants in the arid and hyper-arid deserts of northwestern China. annals of botany. 2024, 135 (3) [2026/01/09].
- ^ Pérez-López, Arely V.; Lim, Sung Don; Cushman, John C. Humboldt Review: Tissue succulence in plants: Carrying water for climate change. Journal of Plant Physiology. 2023-10-01, 289: 154081. ISSN 0176-1617. doi:10.1016/j.jplph.2023.154081.
- ^ Ogburn, R. Matthew; Edwards, Erika J. The Ecological Water-Use Strategies of Succulent Plants. Advances in Botanical Research. 2010, 55: 179–225. doi:10.1016/B978-0-12-380868-4.00004-1.
- ^ Wickens, Gerald E. Ecophysiology of Economic Plants in Arid and Semi-Arid Lands. 1998. doi:10.1007/978-3-662-03700-3.
- ^ Flat, Mailing Address: 400 Pine Canyon Salt; Us, TX 79847 Phone: 915-828-3251 Voicemail messages are responded to within five business days Contact. Cacti / Desert Succulents - Guadalupe Mountains National Park (U.S. National Park Service). National Park Service. U.S. Department of the Interior. [2025-05-29] (英语).
- ^ 64.0 64.1 64.2 Gentry Revisited: The Agaves of the Peninsula of Baja California, México. Portal de Periódicos da CAPES. [2025-06-28] (巴西葡萄牙语).
- ^ Taylor, Amanda; Zotz, Gerhard; Weigelt, Patrick; Cai, Lirong; Karger, Dirk Nikolaus; König, Christian; Kreft, Holger. Vascular epiphytes contribute disproportionately to global centres of plant diversity. Global Ecology and Biogeography. 2022-01, 31 (1): 62–74. doi:10.1111/geb.13411.
- ^ Ogburn, R. Matthew; Edwards, Erika J. The Ecological Water-Use Strategies of Succulent Plants. Advances in Botanical Research. 2010, 55: 179–225 [2025-06-03]. doi:10.1016/B978-0-12-380868-4.00004-1.
- ^ Fernandes, Moabe F.; Cardoso, Domingos; de Queiroz, Luciano P. An updated plant checklist of the Brazilian Caatinga seasonally dry forests and woodlands reveals high species richness and endemism. Journal of Arid Environments. 2020-03-01, 174: 104079. ISSN 0140-1963. doi:10.1016/j.jaridenv.2019.104079.
- ^ Ribeiro, Elâine M. S.; Arroyo-Rodríguez, Víctor; Santos, Bráulio A.; Tabarelli, Marcelo; Leal, Inara R. Chronic anthropogenic disturbance drives the biological impoverishment of the Brazilian Caatinga vegetation. Journal of Applied Ecology. 2015, 52 (3): 611–620 [2025-05-29]. ISSN 1365-2664. doi:10.1111/1365-2664.12420 (英语).
- ^ THE SUCCULENT KAROO IS A MUST SEE - Sanbona Nature and Wilderness Reserve. Sanbona Nature and Wilderness Reserve NPC. SANBONA NPC. 2021-10-01 [2025-05-29] (en-ZA).
- ^ Catherine Rutherford; Madeleine Groves; Maurizio Sajeva. Succulent Plants - A guide to CITES-listed species (PDF). CITES. Rutherford Groves Publishing, London 2018. [2025-05-29].
- ^ Rauh, W. The morphology and systematic position of the Didiereaceae of Madagascar. Bothalia. 1983-11-06, 14 (3/4): 839–843. ISSN 2311-9284. doi:10.4102/abc.v14i3/4.1251 (英语).
- ^ Sun, Ye; Li, Yanshu; Vargas-Mendoza, Carlos Fabián; Wang, Faguo; Xing, Fuwu. Colonization and diversification of the Euphorbia species (sect. Aphyllis subsect. Macaronesicae) on the Canary Islands. Scientific Reports. 2016-09-29, 6 (1): 34454. ISSN 2045-2322. doi:10.1038/srep34454 (英语).
- ^ Pahlevani, Amir H.; Liede-Schumann, Sigrid; Akhani, Hossein. Diversity, distribution, endemism and conservation status of Euphorbia (Euphorbiaceae) in SW Asia and adjacent countries. Plant Systematics and Evolution. 2020-08-28, 306 (5): 80. ISSN 1615-6110. doi:10.1007/s00606-020-01705-4 (英语).
- ^ Jorgensen, Tove H.; Olesen, Jens M. Adaptive radiation of island plants: evidence from Aeonium (Crassulaceae) of the Canary Islands. Perspectives in Plant Ecology, Evolution and Systematics. 2001-01-01, 4 (1): 29–42. doi:10.1078/1433-8319-00013.
- ^ Messerschmid, Thibaud F E; Abrahamczyk, Stefan; Bañares-Baudet, Ángel; Brilhante, Miguel A; Eggli, Urs; Hühn, Philipp; Kadereit, Joachim W; dos Santos, Patrícia; de Vos, Jurriaan M; Kadereit, Gudrun. Inter- and intra-island speciation and their morphological and ecological correlates in Aeonium (Crassulaceae), a species-rich Macaronesian radiation. Annals of Botany. 2023-04-28, 131 (4): 697–721. doi:10.1093/aob/mcad033.
- ^ 76.0 76.1 Thiv, Mike; Esfeld, Korinna; Koch, Marcus. Studying Adaptive Radiation at the Molecular Level: A Case Study in the Macaronesian Crassulaceae-Sempervivoideae. Evolution in Action: Case studies in Adaptive Radiation, Speciation and the Origin of Biodiversity. 2010: 35–59. doi:10.1007/978-3-642-12425-9_3.
- ^ 77.0 77.1 Succulent Plants of the Canary Islands (under construction). THE NATURALIST'S TRAVEL PAGE. 2020-08-22 [2025-05-30] (英语).
- ^ Lens, Frederic; Davin, Nicolas; Smets, Erik; del Arco, Marcelino. Insular Woodiness on the Canary Islands: A Remarkable Case of Convergent Evolution. International Journal of Plant Sciences. 2013-09, 174 (7): 992–1013. ISSN 1058-5893. doi:10.1086/670259.
- ^ Baeckens, Simon; Damme, Raoul Van. The island syndrome. Current Biology. 2020-04-20, 30 (8): R338–R339. ISSN 0960-9822. doi:10.1016/j.cub.2020.03.029 (English).
- ^ Mayuzumi, Shinzo; Ohba, Hideaki. The Phylogenetic Position of Eastern Asian Sedoideae (Crassulaceae) Inferred from Chloroplast and Nuclear DNA Sequences. Systematic Botany. 2004-07-01, 29 (3): 587–598. doi:10.1600/0363644041744329.
- ^ 西双版纳热带森林附生维管植物的物种多样性与区系特征. www.biodiversity-science.net. [2025-06-28]. (原始内容存档于2020-10-29).
- ^ 農業知識入口網-馬鞍藤. kmweb.moa.gov.tw. [2025-06-28] (英语).
- ^ 鵝鑾鼻燈籠草. kplant.biodiv.tw. [2025-06-28]. (原始内容存档于2025-03-05).
- ^ 王瑞江. 《中国热带海岸带耐盐植物资源》. 广东科技出版社. ISBN 987-7-5359-7216-3 请检查
|isbn=值 (帮助). - ^ 2485-狹葉龍舌蘭. hkcww.org. [2025-06-28].
- ^ Australian Succulents - Lawrencia helmsii. Australian Succulents. Attila Kapitany. [2025-06-04].
- ^ Holtum, Joseph AM; Hancock, Lillian P; Edwards, Erika J; Crisp, Michael D; Crayn, Darren M; Sage, Rowan; Winter, Klaus. Australia lacks stem succulents but is it depauperate in plants with crassulacean acid metabolism (CAM)?. Current Opinion in Plant Biology. 2016-06-01, 31: 109–117 [2025-05-29]. ISSN 1369-5266. doi:10.1016/j.pbi.2016.03.018.
- ^ Australian Succulents - Home. australiansucculents.com. [2025-05-30].
- ^ Cuba-Díaz, Marely; Klagges, Macarena; Fuentes-Lillo, Eduardo; Cordero, Cristian; Acuña, Daniela; Opazo, Génesis; Troncoso-Castro, José M. Phenotypic variability and genetic differentiation in continental and island populations of Colobanthus quitensis (Caryophyllaceae: Antarctic pearlwort). Polar Biology. 2017-12-01, 40 (12) [2025-05-30]. ISSN 1432-2056. doi:10.1007/s00300-017-2152-x (英语).
- ^ Contreras, Rodrigo A.; Pizarro, Marisol; Köhler, Hans; Zamora, Pablo; Zúñiga, Gustavo E. UV-B shock induces photoprotective flavonoids but not antioxidant activity in Antarctic Colobanthus quitensis (Kunth) Bartl. Environmental and Experimental Botany. 2019-03-01, 159 [2025-05-30]. ISSN 0098-8472. doi:10.1016/j.envexpbot.2018.12.022.
- ^ Colobanthus quitensis (Kunth) Bartl. | Plants of the World Online | Kew Science. Plants of the World Online. [2025-05-30] (英语).
- ^ Koc, Justyna; Androsiuk, Piotr; Chwedorzewska, Katarzyna Joanna; Cuba-Díaz, Marely; Górecki, Ryszard; Giełwanowska, Irena. Range-wide pattern of genetic variation in Colobanthus quitensis. Polar Biology. 2018-12-01, 41 (12) [2025-05-30]. ISSN 1432-2056. doi:10.1007/s00300-018-2383-5 (英语).
- ^ Haevermans, Thomas; Mantuano, Dulce; Zhou, Meng-Yuan; Lamxay, Vichith; Haevermans, Agathe; Blanc, Patrick; Li, De-Zhu. Discovery of the first succulent bamboo (Poaceae, Bambusoideae) in a new genus from Laos’ karst areas, with a unique adaptation to seasonal drought. PhytoKeys. 2020-08-21, 156: 125–137. doi:10.3897/phytokeys.156.51636.
- ^ Adansonia digitata - Plant Finder. Missouri Botanical Garden. Missouri Botanical Garden. [2025-05-28].
參考書目
- Anderson, Miles, Cacti and Succulents : Illustrated Encyclopedia, Oxford: Sebastian Kelly, 1999, ISBN 978-1-84081-253-4
- Beentje, Henk, The Kew Plant Glossary, Richmond, Surrey: Royal Botanic Gardens, Kew, 2010, ISBN 978-1-84246-422-9
- Compton, R.H. (编), Our South African Flora, Cape Times Ltd, n.d., OCLC 222867742 (publication date also given as 1930s or 1940s)
- Hecht, Hans, Cacti & Succulents p/b, New York: Sterling, 1994, ISBN 978-0-8069-0549-5
- Hewitt, Terry, The Complete Book of Cacti & Succulents, London: Covent Garden Books, 1993, ISBN 978-1-85605-402-7
- Innes, Clive & Wall, Bill, Cacti, Succulents and Bromeliads, London: Cassell for the Royal Horticultural Society, 1995, ISBN 978-0-304-32076-9
- Jacobsen, Hermann, A Handbook of Succulent Plants (Vols 1–3), Poole, Dorset: Blandford Press, 1960, ISBN 978-0-7137-0140-1
- Martin, Margaret J. & Chapman, Peter R., Succulents and their cultivation, London: Faber & Faber, 1977, ISBN 978-0-571-10221-1
- Rowley, Gordon D., Name that Succulent, Cheltenham, Glos.: Stanley Thornes, 1980, ISBN 978-0-85950-447-8